
Est. Julián Camilo Arango Rincón, Dr. Andrés Augusto Arias Sierra y Dr. Pablo Javier Patiño
El anión superóxido producido por el sistema NADPH oxidasa de las células fagocíticas es parte de las especies reactivas del oxígeno (ROS) involucradas en la defensa contra microorganismos patógenos. Su importancia se evidencia en la enfermedad granulomatosa crónica (EGC), una inmunodeficiencia primaria ocasionada por mutaciones en los genes que codifican las proteínas del sistema NADPH oxidasa. Los ratones knock-out para algunas de las proteínas del sistema NADPH oxidasa han permitido comprender la función de las ROS en la destrucción de microorganismos patógenos, la regulación del proceso inflamatorio y la fisiología del sistema NADPH oxidasa. Se espera que esta clase de modelos animales proporcionen avances en la comprensión de los eventos comprendidos en la terapia génica para la EGC, de los nuevos paradigmas acerca del papel de las ROS en la defensa del hospedero y en la descripción de las vías de señalización comprometidas con la activación de este sistema.
Palabras clave: sistema NADPH oxidasa, enfermedad granulomatosa crónica, ratones knock-out, terapia génica, especies reactivas del oxígeno (ROS).
El sistema NADPH oxidasa es un complejo enzimático presente en células fagocíticas como neutrófilos, eosinófilos, monocitos y macrófagos y en células no fagocíticas como linfocitos B, linfocitos T, fibroblastos, células de músculo liso, endoteliales, del cuerpo carotídeo, de pulmón, de riñón, e inclusive en células vegetales.4,5 Este sistema se encuentra conformado por 5 subunidades proteicas, 3 de ellas (p40phox, p47phox y p67phox) se encuentran en el citoplasma formando un complejo macromolecular, mientras que el resto (gp91phox y p22phox) están localizadas en la membrana de los fagolisosomas y la membrana plasmática, donde constituyen un heterodímero llamado flavocitocromo b558.5 En el funcionamiento del sistema NADPH oxidasa intervienen otras proteínas como Rac1 y Rac2.6 La activación del mismo da comienzo al fenómeno llamado “estallido respiratorio”, que se caracteriza por la liberación del anión superóxido (O-2) y otras especies reactivas del oxígeno (ROS) como el peróxido de hidrógeno (H2O2), el radical hidroxilo (OH-) y ácidos hipohalógenos en la vacuola fagocítica o en el medio extracelular, lo cual induce la muerte de microorganismos fagocitados.5, 7
La EGC es una inmunodeficiencia primaria 8-10 en la que los individuos afectados sufren infecciones crónicas y granulomas inflamatorios causados por microorganismos como Staphylococcus aureus, Salmonella sp, Klebsiela sp, Aerobacter sp, Serratia sp y microorganismos oportunistas. Los signos característicos de la EGC son la presencia de abscesos en la piel, osteomielitis de huesos cortos, otitis media, colitis, enteritis, linfoadenitis, microabscesos hepáticos, así como obstrucción de las vías urinarias y gástrica causadas por granulomas.9,11 La causa de este síndrome es la presencia de mutaciones en cualquiera de los genes que codifican las proteínas del complejo enzimático NADPH oxidasa, excepto en el gen de p40 phox.9, 11 La forma más frecuente de EGC es la causada por mutaciones en el gen de la gp91phox (X-EGC), la cual tiene un patrón hereditario ligado al cromosoma X.12,13 Las demás formas de EGC son de tipo autosómicas recesivas debido a mutaciones en los genes de p22phox, p47phox y p67phox.9, 14, 15 Mutaciones en Rac 2 han sido asociadas con defectos en el estallido respiratorio de las células fagocíticas e infecciones recurrentes.16,17
El manejo inicial de los pacientes con EGC consiste en evitar las infecciones a repetición e indicar un tratamiento agresivo con antibióticos cuando estas aparecen. De la misma manera, el tratamiento profiláctico con interferón ? (IFN-?) puede reducir la frecuencia de infecciones en estos pacientes.12,18 La única alternativa de tratamiento curativo para la EGC es el trasplante de médula ósea, y actualmente se trabaja en la terapia génica. Sin embargo, esta alternativa terapéutica aún se encuentra en fase experimental.3,12
Durante gran parte del siglo pasado, el análisis genético se realizaba usando modelos animales que poseían mutaciones naturales; tales modelos presentaban fenotipos alterados, los cuales permitieron dilucidar los mecanismos genéticos y moleculares de varios defectos génicos.19,20 A finales del siglo XX, con el auge de las técnicas de biología molecular, se comenzó a estudiar la función del los genes partiendo de las secuencias genómicas hasta llegar a su respectivo fenotipo, proceso que tomó el nombre de “genética inversa” y que se ha valido de las técnicas de manipulación génica para adicionar, inactivar e incrementar la expresión de ciertos genes en células, tejidos y organismos completos, para luego evaluar los efectos de dichas alteraciones y así entender el papel que desempeñan los genes involucrados.2,19,20 La técnica de los knock-out consiste en reprimir o inactivar la función específica de un gen remplazándolo por formas mutadas de este en estadios celulares muy primitivos. 2,21 En el caso de la EGC, se aprovecha el mecanismo de la recombinación homóloga para inactivar algunos de los genes importantes del sistema NADPH oxidasa generando un modelo murino knock-out para esta enfermedad.
Para la creación de ratones knock-out (tabla 1), 2,19-21 inicialmente se diseña un vector que posee una copia modificada del gen que se desea inactivar, y genes reporteros que permitan confirmar el éxito en el proceso de incorporación del vector a la célula madre embrionaria (CME) y la recombinación homóloga de este. Los genes reporteros más utilizados son el gen de resistencia a la neomicina (neor) y el gen de la timidina quinasa del virus herpes simple (TkHSV).19,21 Con este vector se procede a realizar una transferencia génica a un grupo de CME de ratón, generalmente de la cepa 129, las cuales previamente fueron aisladas de la capa más interna del blastocisto conocida como blastocele.19,21,22 En estas células, el establecimiento del knock-out se logra por medio del fenómeno de recombinación homóloga, el cual consiste en el intercambio de secuencias similares entre cromátidas no hermanas de un par de cromosomas homólogos por la acción conjunta de un grupo de enzimas denominadas recombinasas. Por lo tanto, la eliminación de las secuencias de interés depende de que las recombinasas faciliten la recombinación homóloga entre el vector y secuencias cromosómicas en las CME. 2,20
Tabla1. Herramientas necesarias para inactivar de forma selectiva un gen (crear knock-out).
]]>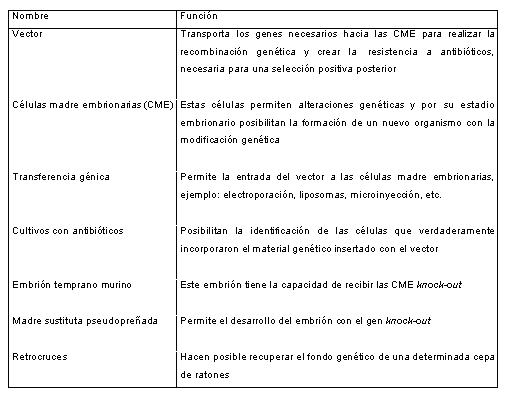
Con el propósito de confirmar la incorporación del vector a las CME, estas son cultivadas en un medio que permite una primera selección (selección positiva), la cual ocurre gracias a la presencia en el vector de un gen de resistencia a un antibiótico, por ejemplo a la neomicina, como se mencionó antes. Posteriormente, para corroborar el éxito de la recombinación homóloga, se realiza una segunda selección (selección negativa), mediante la adición al medio de cultivo de un análogo de nucleósido como el ganciclovir, que impide la replicación del DNA en las células que han incorporado a su genoma el gen TkHSV por procesos de recombinación no homóloga o heteróloga.19,21 La recombinación homóloga también se confirma por medio de técnicas como la PCR y el Southern blot.21,23 Después de la selección de las CME que poseen el gen inactivado mediante recombinación homóloga, estas se implantan en un blastocisto que carece de CME; por lo general se utilizan ratones de la cepa C57BL/6; a su vez este blastocisto es implantado en una madre sustituta pseudopreñada de la misma cepa. Este procedimiento genera un ratón quimera (129-C57BL/6), del cual se recupera el fondo genético de la cepa C57BL/6 por medio de cruces consanguíneos o retrocruces (figura). 22, 24
Figura. Procesos involucrados en la generación de ratones knock-out para las proteínas del sistema NADPH oxidasa y sus aplicaciones .
A: el vector con el gen knock-out es transfectado en células madre embrionarias (CME) de ratón cepa 129. B: las CME son cultivadas con neomicina (G418), para seleccionar las células que incorporaron el vector (selección positiva), luego el cultivo es expuesto al ganciclovir, el cual selecciona las células que realizaron una recombinación homologa (selección negativa). C: las CME knock-out son implantadas en un blastocisto de ratón cepa C57BL6 y este a su vez es implantado en una madre pseudopreñada C57BL6; la descendencia corresponde a ratones quiméricos 129/C57BL6; mediante retrocruces se recupera el fondo genético de la cepa C 57BL6. D: los ratones knock-out modelo de enfermedad granulomatosa crónica son empleados en diferentes tipos de estudios.
Ratones knock-out como una herramienta para el estudio del sistema NADPH oxidasa
El conocimiento sobre la función y la interacción entre los componentes del sistema NADPH oxidasa nos permite entender los mecanismos moleculares implicados en la producción de las especies reactivas del oxígeno y la generación de estrategias relacionadas con la modulación positiva o negativa de la producción de estos agentes reactivos. Estudios previos del ensamble y activación del sistema NADPH oxidasa, han usado células hematopoyéticas humanas y murinas, o líneas celulares hematopoyéticas inmortalizadas. 25-27 Los neutrófilos no son fáciles de modificar genéticamente y las líneas inmortalizadas tienen limitaciones de manipulación, transfección y expresión a largo plazo de proteínas heterólogas. Otros grupos como el nuestro, han utilizado sistemas no hematopoyéticos basado en células COS para determinar el efecto de mutaciones en los genes que codifican para las proteínas del sistema NADPH oxidasa en la producción de especies reactivas del oxígeno (ROS). 28-30 Por otro lado, los sistemas libres de células ofrecen flexibilidad para el uso de proteínas recombinantes. 31,32
]]>
Ratones knock-out para gp91phox (gp91phoxKO)
Pollock y colaboradores en 1995 crearon el primer modelo de enfermedad granulomatosa crónica ligada al cromosoma X (EGC-X) al generar ratones knock-out para gp91phox. Este tipo de ratones ha sido útil para evaluar el papel que poseen las ROS en infecciones crónicas, en la regulación del proceso inflamatorio y como modelo experimental para la terapia génica en la EGC-X.3
Cuando los ratones gp91phoxKO son infectados por vía aérea con Aspergillus fumigatus, desarrollan necrosis peribronquial y neumonía alveolar caracterizada por un infiltrado inflamatorio denso con presencia de hifas, abscesos en hígado, riñón y hueso; algunos de estos ratones mueren a las 72 horas después de la inoculación. A diferencia de los ratones gp91phoxKO, los ratones tipo silvestre infectados con este mismo microorganismo sufren de neumonía peribronquial, que se resuelve 7 días posinfección. El cuadro clínico del ratón gp91phoxKO mencionado inicialmente es similar al que suelen presentar los humanos con EGC-X, caracterizado por neumonías graves, abscesos en pulmón, nódulos linfáticos, hígado y hueso.3
Con el fin de evaluar la regulación del proceso inflamatorio en la EGC-X, los ratones gp91phoxKO se inocularon intraperitonealmente con tioglicolato de sodio. Esta sustancia irritante permite evaluar la quimiotaxis de neutrófilos a un determinado sitio sin necesidad de causar una infección con microorganismos. Como resultado, se evidenció una peritonitis crónica y un infiltrado de neutrófilos de 2 a 3 veces mayor en los ratones gp91phoxKO comparado con ratones tipo silvestre a las 18 y 24 horas posinoculación. Este hallazgo demuestra que los mecanismos dependientes del oxígeno, además de mediar un papel importante en la destrucción de microorganismos como A. fumigatus, están involucrados en la regulación del proceso inflamatorio aún cuando el microorganismo ya haya sido eliminado.36
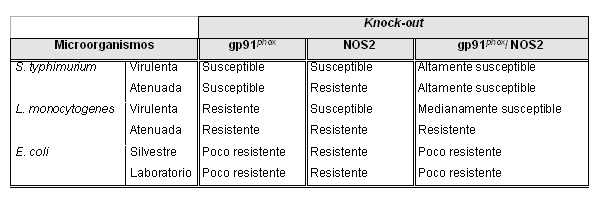
Una característica importante de los ratones gp91phoxKO consiste en que no sufren infecciones espontáneas por microorganismos propios de su flora normal; algo similar ocurre con los ratones knock-out para la enzima óxido nítrico-sintasa (NOS2). Estos hallazgos sugieren la existencia de otros mecanismos microbicidas que compensan la deficiencia de las ROS y las especies reactivas del nitrógeno (RNS) en la respuesta contra infecciones por flora normal.37 Para comprobar esta hipótesis, Shiloh y colaboradores crearon un ratón doblemente deficiente para gp91phox y NOS2. Después de estar en condición libre de microorganismos externos, estos ratones desarrollaron infecciones espontáneas por microorganismos de la flora normal del tracto digestivo, mientras que los ratones deficientes para una sola proteína, gp91phox o NOS2, no sufrieron ningún tipo de infección bajo las mismas condiciones. Esto demuestra que en el modelo murino las ROS y RNS son esenciales para el control de la flora normal. Sin embrago, existe redundancia entre ambos mecanismos inmunes en etapas tempranas de la respuesta inmune innata contra estos microorganismos.37
]]>
Tabla 2. Susceptibilidad de ratones gp91phoxKO, NOS2KO y gp91phox/NOS2 KO a S. typhimurium, E. coli y L. monocytogenes.
Ratones knock-out para p47phox (p47phoxKO)
En 1995 Jackson y colaboradores crearon el primer ratón knock-out deficiente de la proteína p47phox.33 Este modelo animal de EGC ha posibilitado el estudio del proceso inflamatorio, de la formación de granulomas en esta enfermedad y la relación del sistema NADPH oxidasa con enfermedades como aterosclerosis, carcinogénesis, daños por isquemia-reperfusión y la formación de cataratas.33
Se ha reportado que los ratones p47phoxKO desarrollan un infiltrado de leucocitos 2 veces mayor al de los ratones normales heterocigotos, demostrando una falta de modulación del proceso inflamatorio durante la respuesta anti-infecciosa.36
Inicialmente, se pensó que esta desregulación se debía a una infección persistente donde el microorganismo patógeno sobrevive y continúa estimulando la migración de neutrófilos y macrófagos al sitio de la infección por la carencia de ROS. 36
]]>
Tabla 3. Importancia de Rac 2 en diferentes vías de activación
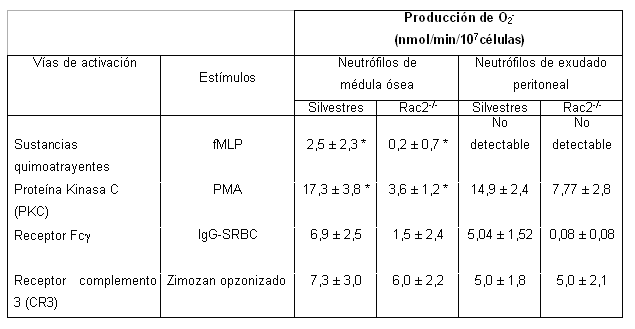
Los diversos hallazgos en los ratones knock-out para Rac 2 han ayudado a comprender su papel en la fisiología de las células fagocíticas. Ahora se sabe que Rac2 es una molécula necesaria para la producción de anión superóxido solo en determinadas vías, especialmente en respuesta al receptor Fc?. 6 Sin embargo, en situaciones en las que no se altera la actividad del sistema NADPH oxidasa o esta es llevada a cabo parcialmente, se cree que existen otras moléculas que compensen la función de Rac2, por ejemplo Rac1, la cual es una proteína que se expresa en todas la células y posee una homología en la secuencia de aminoácidos con Rac2 del 92 %. 6,34,35
Terapia génica en ratones knock-out
Los ratones knock-out para p47phox, gp91phox y Rac2, además de ser modelos para entender la fisiopatología de la EGC y el funcionamiento básico del sistema NADPH oxidasa, han sido importantes en el desarrollo de terapias para la EGC. Una de ellas es la terapia génica, la cual consiste en el remplazo del material genético alterado en las células de los pacientes con esta enfermedad. En estudios en los cuales se han empleado ratones knock-out deficientes de gp91phox como modelos de terapia génica, se ha obtenido una corrección parcial de la actividad oxidasa entre el 50 % - 80 % de los neutrófilos de torrente sanguíneo, con una duración hasta de 18 meses. 43,44 En el caso de ratones p47phoxKO, se ha observado que entre el 8,4 y 17,3 % de los neutrófilos de torrente sanguíneo, presentan actividad oxidasa, que perdura hasta un mes después de la transferencia génica; después de 3 meses el porcentaje se reduce entre el 2,6 y el 10 %.45 Al realizar pruebas funcionales en estos ratones se observó que 2 de cada 9 ratones manipulados con terapia génica para p47phox resolvían una infección con B. cepacia, 45 mientras que en los ratones con terapia génica para gp91phox se evitaba el desarrollo de neumonía por A. fumigatus. 43
Los ensayos clínicos de terapia génica de fase I en humanos no han sido exitosos, ya que los pacientes X-EGC solo presentan del 0,004 al 0,05 % de neutrófilos circulantes con actividad oxidasa.46 Algo similar sucedió con la terapia génica para p47phox, en la cual los pacientes deficientes de esta proteína presentaron del 0,06 al 0,2 % de neutrófilos circulantes con actividad oxidasa.46 Estos resultados preliminares indican que aún son necesarios más estudios en esta área, y que tal vez con el mejoramiento de las técnicas de transferencia génica será posible lograr un tratamiento adecuado para los pacientes con EGC. Los ratones knock-out han sido útiles para evaluar diversos aspectos relacionados con la terapia génica, tales como efectos adversos, consecuencias de los métodos de reimplante de células progenitoras, efectos de la expresión constitutiva de transgenes en diferentes tejidos, el efecto fisiológico del transgen y su grado de expresión.47 Sin embargo, estos resultados no son totalmente aplicables en humanos, ya que existen múltiples diferencias entre los modelos murinos y el humano en lo referente a células fagocíticas. Por ejemplo, en el humano hay un mayor porcentaje de neutrófilos en el torrente sanguíneo que en el ratón, igualmente las vías de señalización por receptores tipo Toll y la producción de óxido nítrico por macrófagos es diferente entre los ratones y los humanos. Como estas, existen otras diferencias en la inmunidad innata y adquirida que demuestran la importancia de manejar estas discrepancias a la hora de interpretar y aplicar los resultados preliminares de la terapia génica obtenida en ratones.48
]]>
The superoxide anion produced by the NADPH oxidase system of the phagocytic cells is part of the reactive oxygen species involved in the defense against pathogenic microorganisms. Its importance is evidenced in the chronic granulomatous disease (CGD), a primary immunodeficiency caused by mutations in the genes that code the proteins of the NADPH oxidase system. The knock-out mice for some of the proteins of the NADPH oxidase system have allowed to understand the function of the ROS in the destruction of pathogenic microorganisms, the regulation of the inflammatory process, and the physiology of the NADPH oxidase system, It is expected that this class of animal models makes possible to attain advances in the understanding of the events included in the genic therapy for the CGD, of the paradigms about the role of the ROS in the defense of the host, and in the description of the signaling pathways involved in the activation of this system.
Key words: NADPH oxidase system, chronic granulomatous disease, knock-out mice, genic therapy, reactive oxygen species (ROS).
1. Benavides F, Guenet JL. Murine models for human diseases. Medicina (B Aires) 2001;61(2):215-31.
2. Lodish H, Berk A, Zipursky SL, Matsudaira P, Baltimore D, Darnell J. Molecular cell biology. W. H. Freeman and Company; 1999.
3. Pollock JD, Williams DA, Gifford MA, Li LL, Du X, Fisherman J, et al. Mouse model of X-linked chronic granulomatous disease, an inherited defect in phagocyte superoxide production. Nat Genet 1995;9(2):202-9.
4. Jackson SH, Devadas S, Kwon J, Pinto LA, Williams MS. T cells express a phagocyte-type NADPH oxidase that is activated after T cell receptor stimulation. Nat Immunol 2004;5(8):818-27.
5. Vignais PV. The superoxide-generating NADPH oxidase: Structural aspects and activation mechanism. Cell Mol Life Sci 2002;59(9):1428-59.
]]> 6. Kim C, Dinauer MC. Rac2 is an essential regulator of neutrophil nicotinamide adenine dinucleotide phosphate oxidase activation in response to specific signaling pathways. J Immunol 2001;166(2):1223-32.7. Klebanoff S. Inflammation: Basic principles and clinical correlates. En: Gallin JI, Snyderman R, eds. 3 ed; 1999.
8. Segal BH, Leto TL, Gallin JI, Malech HL, Holland SM. Genetic, biochemical, and clinical features of chronic granulomatous disease. Medicine (Baltimore) 2000;79(3):170-200.
9. Heyworth PG, Cross AR, Curnutte JT. Chronic granulomatous disease. Curr Opin Immunol 2003;15(5):578-84.
10. Montoya CJ, Henao J, Salgado H, Olivares MM, López JA, Rugeles C, et al. Phenotypic diagnosis of primary immunodeficiencies in Antioquia, Colombia, 1994-2002. Biomedica 2002;22(4):510-8.
11. Zambrano E, Esper F, Rosenberg R, Kim J, Reyes-Mugica M. Chronic Granulomatous disease. Pediatr Dev Pathol 2003;6(6).
12. Dinauer MC, Lekstrom-Himes JA, Dale DC. Inherited neutrophil disorders: Molecular basis and new therapies. Hematology (Am Soc Hematol Educ Program) 2000:303-318.
13. Patino PJ, Perez JE, López JA, Condino-Neto A, Grumach AS, Botero JH, et al. Molecular analysis of chronic granulomatous disease caused by defects in gp91-phox. Hum Mutat 1999;13(1):29-37.
14. Cornejo De Luigi M, Lopez JA, Navarro S, García D, Patino PJ. Clinical and molecular characterization of autosomal recessive chronic granulomatous disease caused by p47-phox deficiency. Rev Med Chil 2000;128(5):491-8.
15. Patino PJ, Rae J, Noack D, Erickson R, Ding J, de Olarte DG, et al. Molecular characterization of autosomal recessive chronic granulomatous disease caused by a defect of the nicotinamide adenine dinucleotide phosphate (reduced form) oxidase component p67-phox. Blood 1999;94(7):2505-14.
]]> 16. Williams DA, Tao W, Yang F, Kim C, Gu Y, Mansfield P, et al. Dominant negative mutation of the hematopoietic-specific Rho GTPase, Rac2, is associated with a human phagocyte immunodeficiency. Blood 2000;96(5):1646-54.17. Ambruso DR, Knall C, Abell AN, Panepinto J, Kurkchubasche A, Thurman G, et al. Human neutrophil immunodeficiency syndrome is associated with an inhibitory Rac2 mutation. Proc Natl Acad Sci USA 2000;97(9):4654-9.
18. Condino-Neto A, Newburger PE. Interferon-gamma improves splicing efficiency of CYBB gene transcripts in an interferon-responsive variant of chronic granulomatous disease due to a splice site consensus region mutation. Blood 2000;95(11):3548-54.
19. Strachan T, Read AP. Human molecular genetics. 2 ed. Bios Scientific Publishers Ltd; 1999.
20. Griffiths AJF, Miller JH, Suzuki DT, Lewontin RC, Gelbart WM. An introduction to genetic analysis. 7 ed. W. H. Freeman; 2000.
21. Watson JD, Gilman M, Witkowski J, Zoller M. Recombinant DNA. 2 ed. Scientific American Books; 1992.
22. Seong E, Saunders TL, Stewart CL, Burmeister M. To knockout in 129 or in C57BL/6: that is the question. Trends Genet 2004;20(2):59-62.
23. Capecchi MR. Targeted gene replacement. Sci Am 1994;270(3):52-9.
24. Wong GT. Speed congenics: applications for transgenic and knock-out mouse strains. Neuropeptides 2002;36(2-3):230-6.
25. De Mendez I, Adams AG, Sokolic RA, Malech HL, Leto TL. Multiple SH3 domain interactions regulate NADPH oxidase assembly in whole cells. Embo J 1996;15(6):1211-20.
]]> 26. Dusi S, Nadalini KA, Donini M, Zentilin L, Wientjes FB, Roos D, et al. Nicotinamide-adenine dinucleotide phosphate oxidase assembly and activation in EBV-transformed B lymphoblastoid cell lines of normal and chronic granulomatous disease patients. J Immunol 1998;161(9):4968-74.27. Paclet MH, Coleman AW, Burritt J, Morel F. NADPH oxidase of Epstein-Barr-virus immortalized B lymphocytes. Effect of cytochrome b(558) glycosylation. Eur J Biochem 2001;268(19):5197-208.
28. Arias AA, Matute JD, Jiabin D, Patiño PJ, Dinauer MC. Expresión y actividad de posibles polimorfismos provenientes de individuos normales en la proteína de 67 kd del sistema NADPH oxidasa utilizando el sistema COSphox. Biomedica 2004;24(3):262-72.
29. -----------. Molecular analysis of mutant forms of p67-phox using the COS-phox system. En: Hematology ASo, ed. 44th Annual Meeting American Society of Hematology, 2002. Philadelphia, Pennsylvania: Blood; 2002. p. 458a.
30. Price MO, McPhail LC, Lambeth JD, Han CH, Knaus UG, Dinauer MC. Creation of a genetic system for analysis of the phagocyte respiratory burst: high-level reconstitution of the NADPH oxidase in a nonhematopoietic system. Blood 2002;99(8):2653-61.
31. Cross AR, Erickson RW, Ellis BA, Curnutte JT. Spontaneous activation of NADPH oxidase in a cell-free system: Unexpected multiple effects of magnesium ion concentrations. Biochem J 1999;338 ( Pt 1):229-33.
32. Peng G, Huang J, Boyd M, Kleinberg ME. Properties of phagocyte NADPH oxidase p47-phox mutants with unmasked SH3 (Src homology 3) domains: Full reconstitution of oxidase activity in a semi-recombinant cell-free system lacking arachidonic acid. Biochem J 2003;373(Pt 1):221-9.
33. Jackson SH, Gallin JI, Holland SM. The p47phox mouse knock-out model of chronic granulomatous disease. J Exp Med 1995;182(3):751-8.
34. Li S, Yamauchi A, Marchal CC, Molitoris JK, Quilliam LA, Dinauer MC. Chemoattractant-stimulated Rac activation in wild-type and Rac2-deficient murine neutrophils: Preferential activation of Rac2 and Rac2 gene dosage effect on neutrophil functions. J Immunol 2002;169(9):5043-51.
35. Roberts AW, Kim C, Zhen L, Lowe JB, Kapur R, Petryniak B, et al. Deficiency of the hematopoietic cell-specific Rho family GTPase Rac2 is characterized by abnormalities in neutrophil function and host defense. Immunity 1999;10(2):183-96.
]]> 36. Segal BH, Doherty TM, Wynn TA, Cheever AW, Sher A, Holland SM. The p47(phox-/-) mouse model of chronic granulomatous disease has normal granuloma formation and cytokine responses to Mycobacterium avium and Schistosoma mansoni eggs. Infect Immun 1999;67(4):1659-65.37. Shiloh MU, MacMicking JD, Nicholson S, Brause JE, Potter S, Marino M, et al. Phenotype of mice and macrophages deficient in both phagocyte oxidase and inducible nitric oxide synthase. Immunity 1999;10(1):29-38.
38. Nathan C, Shiloh MU. Reactive oxygen and nitrogen intermediates in the relationship between mammalian hosts and microbial pathogens. Proc Natl Acad Sci USA 2000;97(16):8841-8.
39. Chang YC, Segal BH, Holland SM, Miller GF, Kwon-Chung KJ. Virulence of catalase-deficient aspergillus nidulans in p47(phox)-/- mice. Implications for fungal pathogenicity and host defense in chronic granulomatous disease. J Clin Invest 1998;101(9):1843-50.
40. Cooper AM, Segal BH, Frank AA, Holland SM, Orme IM. Transient loss of resistance to pulmonary tuberculosis in p47(phox-/-) mice. Infect Immun 2000;68(3):1231-4.
41. Hsich E, Segal BH, Pagano PJ, Rey FE, Paigen B, Deleonardis J, et al. Vascular effects following homozygous disruption of p47(phox) : An essential component of NADPH oxidase. Circulation 2000;101(11):1234-6.
42. Reeves EP, Lu H, Jacobs HL, Messina CG, Bolsover S, Gabella G, et al. Killing activity of neutrophils is mediated through activation of proteases by K+ flux. Nature 2002;416(6878):291-7.
43. Bjorgvinsdottir H, Ding C, Pech N, Gifford MA, Li LL, Dinauer MC. Retroviral-mediated gene transfer of gp91phox into bone marrow cells rescues defect in host defense against Aspergillus fumigatus in murine X-linked chronic granulomatous disease. Blood 1997;89(1):41-8.
44. Dinauer MC, Li LL, Bjorgvinsdottir H, Ding C, Pech N. Long-term correction of phagocyte NADPH oxidase activity by retroviral-mediated gene transfer in murine X-linked chronic granulomatous disease. Blood 1999;94(3):914-22.
45. Mardiney M, Jackson SH, Spratt SK, Li F, Holland SM, Malech HL. Enhanced host defense after gene transfer in the murine p47phox-deficient model of chronic granulomatous disease. Blood 1997;89(7):2268-75.
]]> 46. Malech HL, Maples PB, Whiting-Theobald N, Linton GF, Sekhsaria S, Vowells SJ, et al. Prolonged production of NADPH oxidase-corrected granulocytes after gene therapy of chronic granulomatous disease. Proc Natl Acad Sci U S A 1997;94(22):12133-8.47. Goebel WS, Kume A, Dinauer MC. Gene therapy for choronic granulomatous disease and leukocyte adhesion deficiency. Intern J Ped Hematol Oncol 2001;7(5-6):359-372.
48. Mestas J, Hughes CC. Of mice and not men: Differences between mouse and human immunology. J Immunol 2004;172(5):2731-8.
Recibido: 29 de julio de 2005. Aprobado: 18 de agosto de 2005
Julián Camilo Arango Rincón. Street 62 # 52-59 (SIU) Lab: 530. Tel: 210 6475. Universidad de Antioquia. e-mail: mjcar610@udea.edu.co; arjulian2@hotmail.com
http://medicina.udea.edu.co/Investigacion/Grupos/inmunopri/index.htm